
Cell | 命运的齿轮于二细胞期始动
“ 道生一,一生二,二生三,三生万物。”——《老子·德经·第四十二章》
这是道家哲学中最广为人知、也是最能体现其核心思想的一句话。老子认为“道”是世界万物的本源,万物在其蕴含的阴阳二气中激荡创生。
这句话同样预言了哺乳动物早期胚胎发育的过程(图1):生命起源于合子(“一”);合子分裂形成的桑椹胚(morula)逐步分化(“二”)为内细胞团(inner cell mass, ICM)和滋养层(trophectoderm, TE);内细胞团进一步分化(“三”)为上胚层(epiblast, EPI)和下胚层(hypoblast, HYPO);前者最终发育为构成机体的所有细胞(“万物”)。
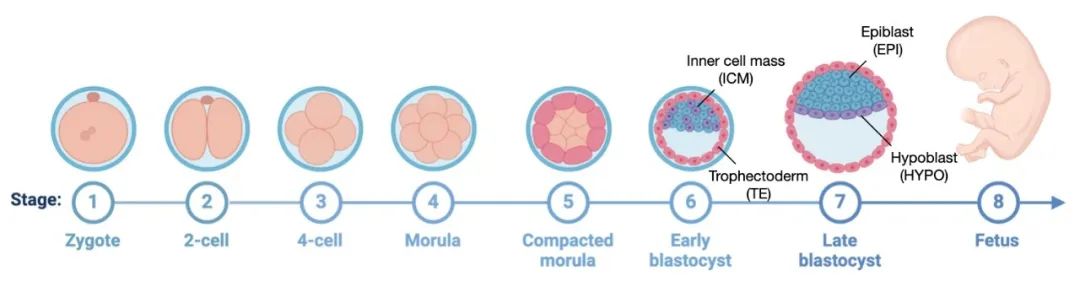
图1 哺乳动物的早期胚胎发育过程
而其中由“一”生“二”,即桑椹胚中的卵裂球(blastomere)向ICM和TE的分化是在什么时候发生的,一直是发育生物学领域悬而未决的问题。如果以细胞分化的潜能作衡量,那么直到16细胞期的卵裂球依然具有发育为完整个体的能力(即全能性,totipotency)。但可以据此认为这些卵裂球彼此没有分别,都对胚胎作出了相同的贡献吗?
近期对体细胞谱系的一系列溯源性研究,对这一观点提出了挑战。2021年,多个课题组通过检测体细胞内随时间累积的突变,重建了人类胚胎的发育分化谱系。令人意外的是,这些研究均指出:人的大多数、甚至可以说是几乎全部组织,都只是由二细胞期卵裂球的其中一个产生的。
这一结论究竟是确有其实,还是溯源研究的固有偏差?如果属实,决定二细胞期卵裂球命运的齿轮又是由谁来推动?2024年5月,来自加州理工学院的MagdalenaZernicka-Goetz课题组对这些问题作出了解答。研究发现,二细胞期卵裂球对人类胚胎的贡献存在明显的不对称性,而这一数量上的不对称性又与8至16细胞期间发生的不对称分裂密切相关。研究进一步指出,二细胞期卵裂球的分裂时间点并不一致;先分裂的卵裂球往往更容易在8至16细胞期进行不对称分裂,从而更有可能发育为胚胎组织。
二细胞期卵裂球对胚胎的贡献不均
对人类胚胎发育的研究往往受限于材料的稀缺。而在本研究中,研究者获得了捐赠的54枚体外受精合子,用于开展对细胞谱系的顺行性追踪。为区分两枚二细胞期卵裂球,研究者在合子完成第一次分裂后,随机向其中一枚卵裂球注射了编码质膜定位GFP的mRNA,使这枚卵裂球及其分裂出的子代细胞均带有绿色荧光,并使用延时成像技术对胚胎的卵裂过程进行追踪(图3)。
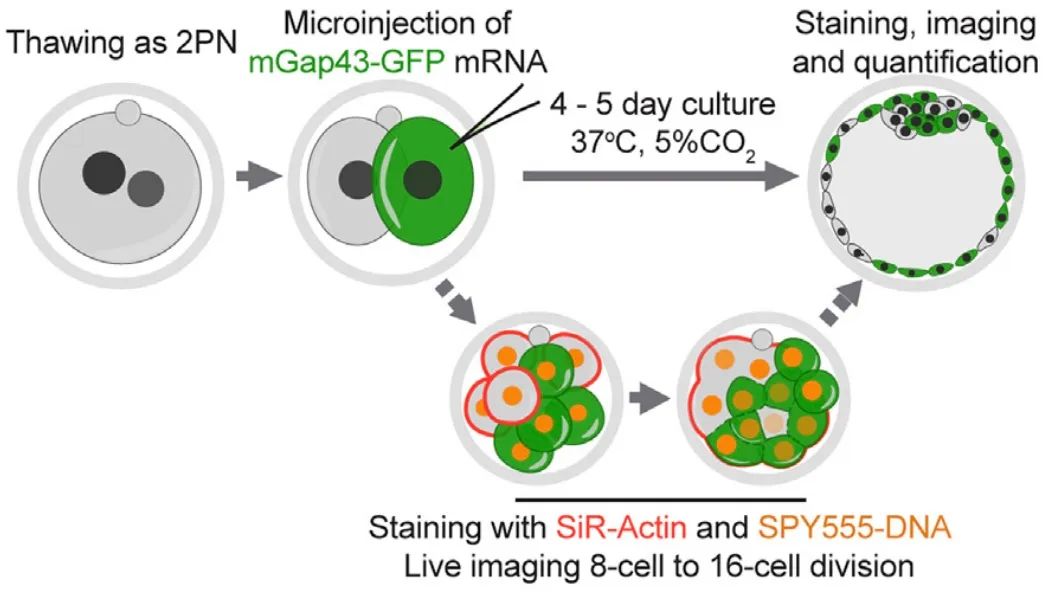
图3 人类胚胎细胞谱系的顺行性追踪
研究者根据延时成像结果对胚胎中的每一个细胞进行了三维重构(图4G),并根据GFP标记与否和组织类型对细胞的来源和命运进行了分类。令人意外的是,相较于对TE,两个二细胞期卵裂球对ICM的贡献(即二者的子代细胞在ICM中的占比)在大多数胚胎中都是不均等的(图4H-I)。
进一步,研究者使用SOX17染色法区分ICM内的上胚层和下胚层细胞,并对两个二细胞期卵裂球在各胚层中的占比进行了统计。与前文类似,两卵裂球对上胚层的贡献存在较明显的差异,而对下胚层则更加均衡(图4J-L)。鉴于上胚层是后续胚胎发育的细胞来源,这意味着我们体内的大多数细胞可能仅来自于其中一个二细胞期卵裂球。
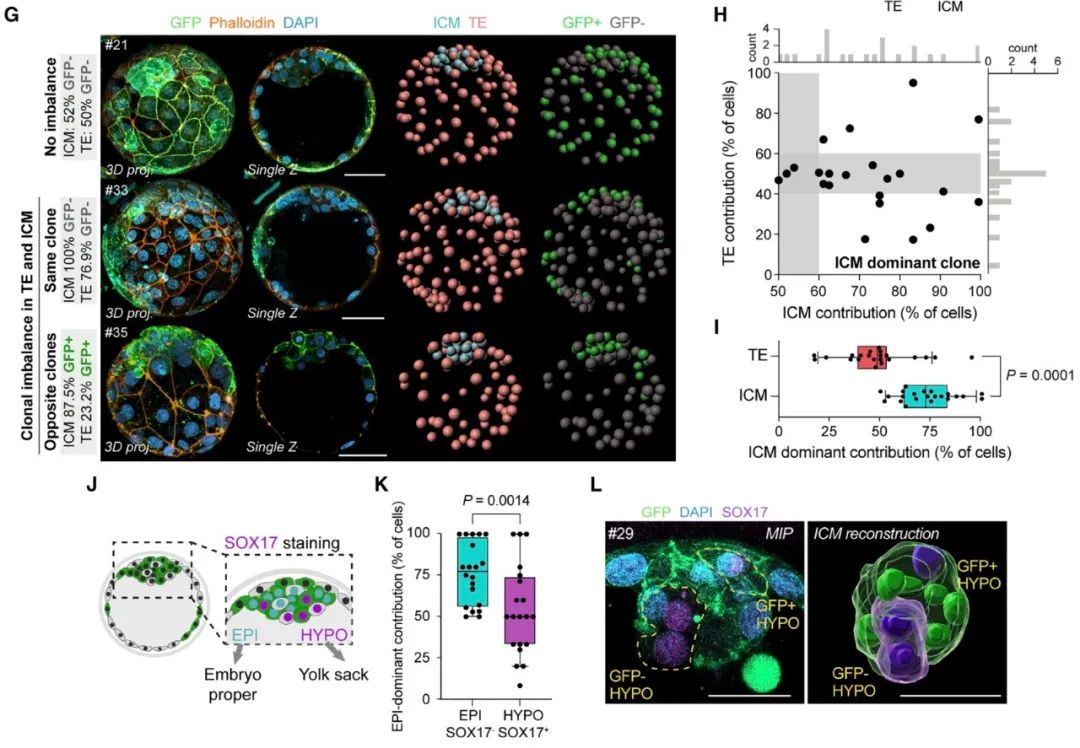
图4 二细胞期卵裂球对胚胎的贡献不均
8至16细胞期的不对称分裂与ICM组成相关
二细胞期卵裂球在胚胎细胞数量上的不均衡是如何产生的?或许先前对小鼠胚胎的研究能给予一些提示:小鼠的ICM细胞命运由8至64细胞期间的三轮不对称细胞分裂(asymmetric cell division, ACD),即使得其中一个子代细胞进入胚胎内部的细胞分裂决定。在第一轮ACD中进入胚胎内部的细胞倾向于分化为上胚层细胞,而在二、三轮ACD中进入胚胎内部的细胞则更倾向于分化为原始内胚层(primitive endoderm,即人类的下胚层)。这一现象在人类胚胎中也是如此吗?
研究者使用活细胞染料标记了胚胎细胞的细胞核和微丝,并对卵裂过程中的胚胎进行了长时程成像追踪(图5B)。得益于较高的成像精度,研究者得以对胚胎的卵裂过程进行三维重构(图5F),并准确区分ACD和一般的对称细胞分裂(symmetric cell division, SCD;图5A)。通过对卵裂过程和细胞分配的统计研究者发现,发生ACD的细胞比例与ICM的组成高度相关:如在胚胎#4中,发生ACD的三个细胞均为不含GFP标记(GFP-)的细胞,而后续形成的ICM也均由GFP-细胞组成;而在胚胎#1中,两次ACD分别由一个GFP标记(GFP+)细胞和一个GFP-细胞完成,最终ICM中两类细胞的占比也相对均衡(图5D-E)。
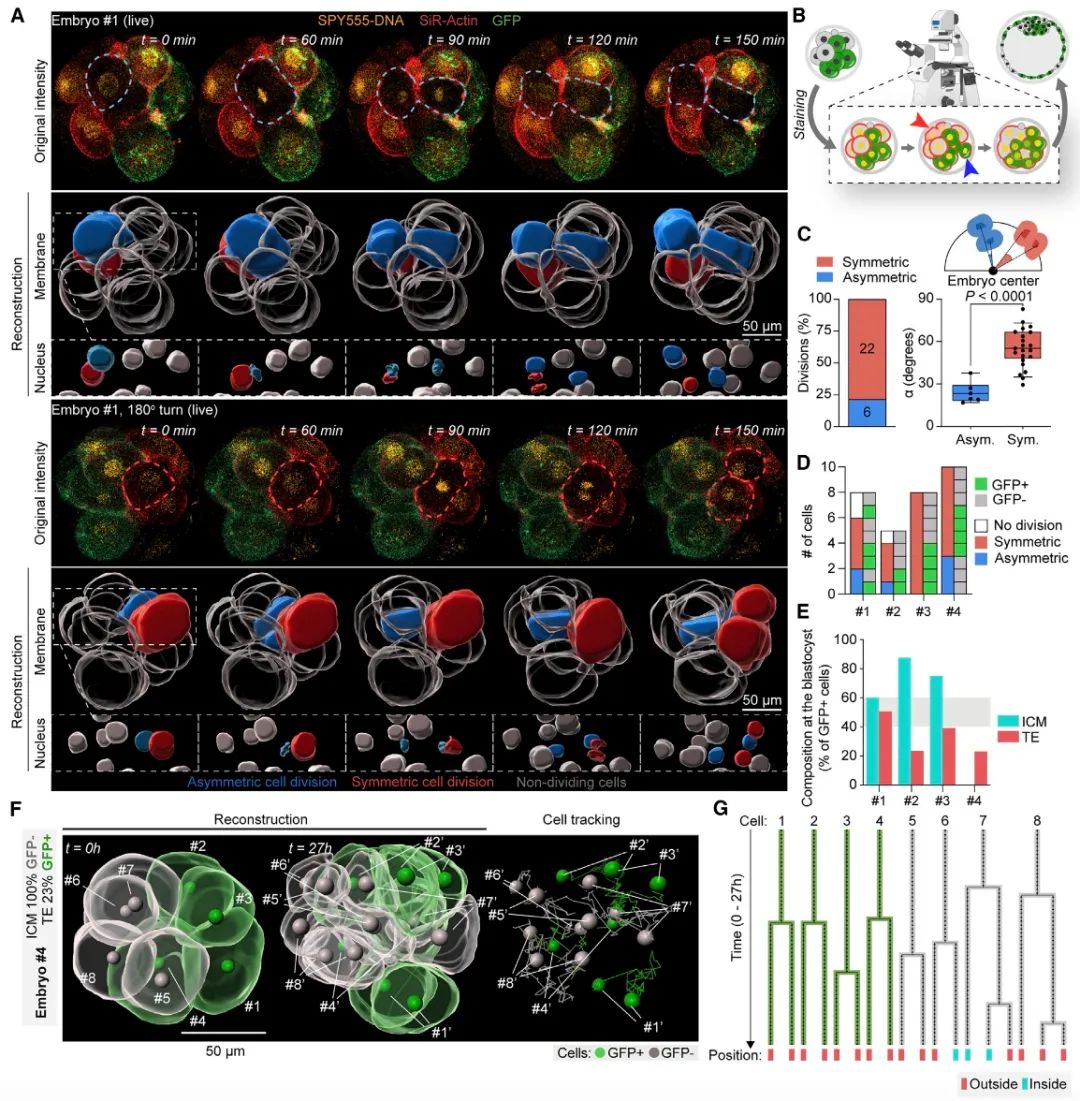
图5 8至16细胞期的不对称分裂与ICM组成相关
受限于胚胎数量的不足,上述观察只在4个胚胎中成功进行。为了进一步验证这一结论,研究者对试管婴儿诊所用于评估胚胎质量的长时程明场影像进行了类似的谱系分析。与先前的报道一致,绝大多数胚胎在8至16细胞期均发生了1-3次ACD(图6C)。对于发生了一次或三次ACD的胚胎而言,两个二细胞期卵裂球发生ACD的次数一定是不相同的。而在发生了两次ACD的胚胎中,也有一半左右的胚胎只由其中一个二细胞期卵裂球完成(图6D)。最终,这些胚胎的ICM组成也并不均衡,甚至有超过半数的胚胎的ICM仅来自于其中一个二细胞期卵裂球(图6F)。
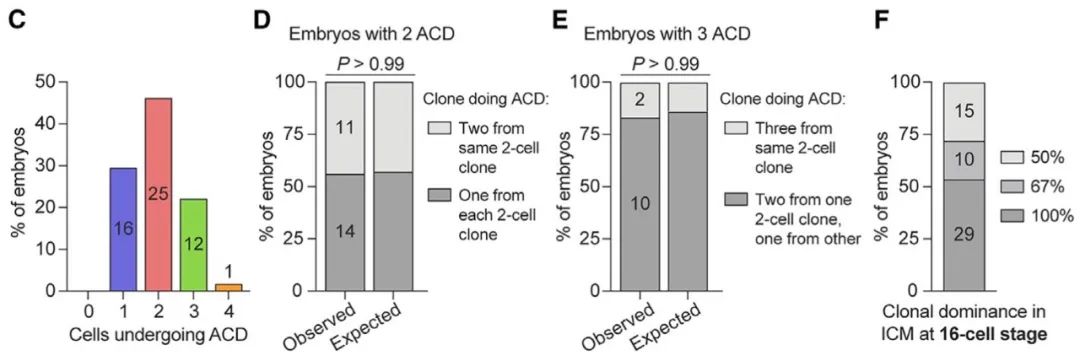
图6 对明场影像的分析进一步验证相关性
先分裂的二细胞期卵裂球更易发生第一次ACD
在作者先前的研究中,小鼠的二细胞期卵裂球的分裂时间点大多存在差异;先分裂的卵裂球倾向于形成ICM,后分裂的则倾向于形成TE。而这一规律在人类中的保守性也在本研究中得到了验证:大多数人类胚胎的二细胞期卵裂球的分裂也并不同步,而这一异步性还能在其子代的细胞中得以保持(图7H-K)。
研究者对这些异步分裂的胚胎的细胞进行了谱系追踪(图7L)。与小鼠相似,人类胚胎中较早分裂的二细胞期卵裂球也更容易发生第一次ACD(图7M)。而在发生多次ACD的胚胎中,第二次ACD大多由晚分裂的卵裂球完成,第三次ACD则仍由早分裂的卵裂球完成(图7N, P)。最终,多数异步分裂胚胎的ICM也主要由先分裂的卵裂球组成(图7O)。
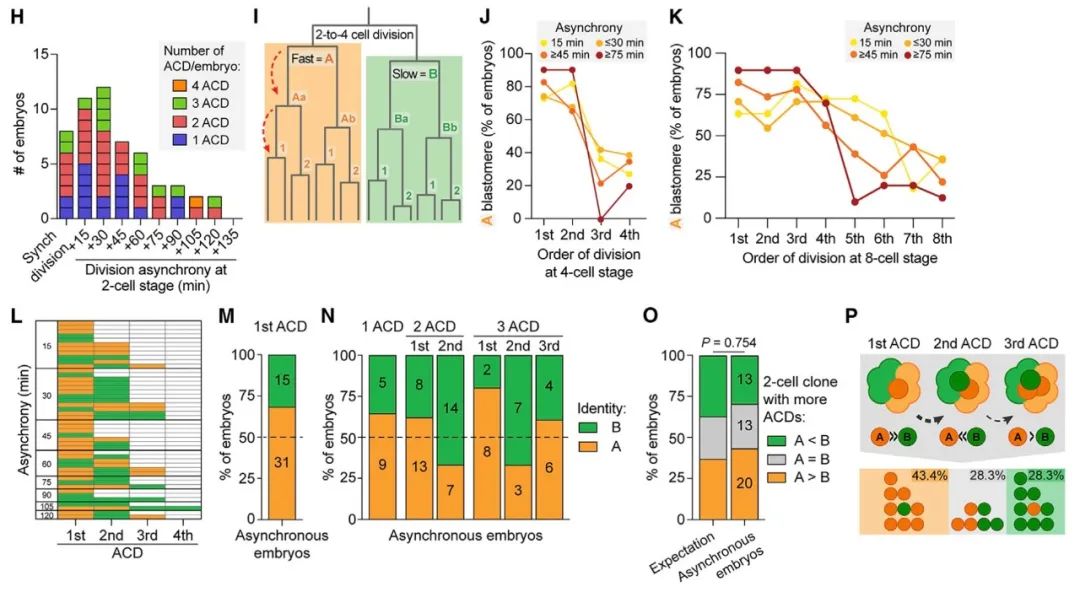
图7 先分裂的二细胞期卵裂球更易发生第一次ACD
总的来说,这项研究将原先局限于啮齿类动物胚胎的现象推广至了人类胚胎,发现了二细胞期卵裂球分裂的异步性可转变为8细胞期不对称分裂的不对称性,而分裂空间上的不对称性还将反映为ICM和上胚层组成的不对称性,并最终令两卵裂球对胚胎的贡献产生差异(图8)。
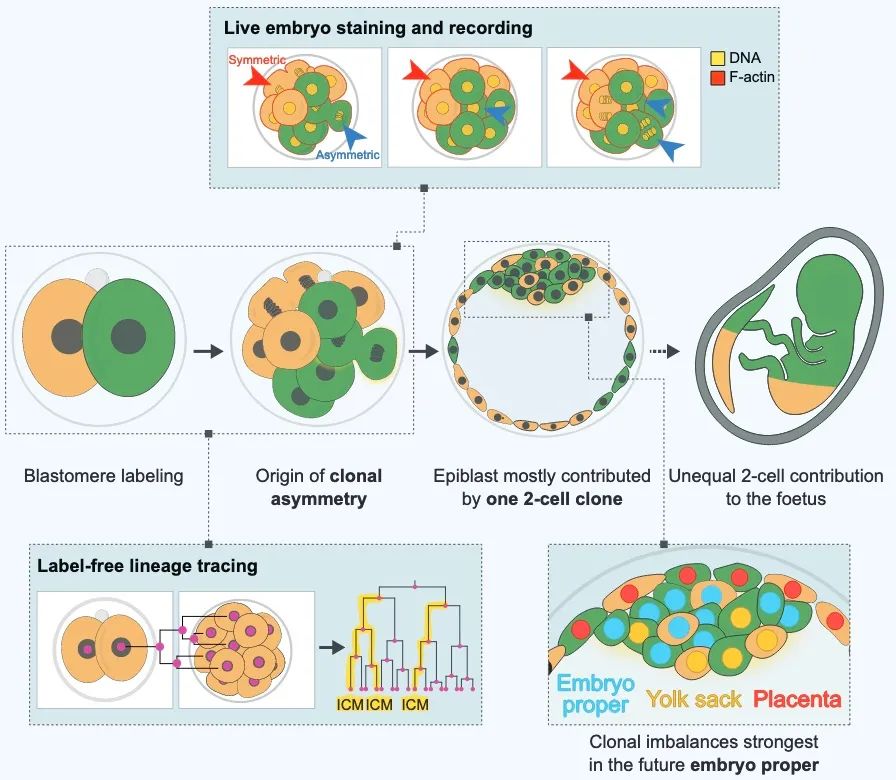
图8 本研究的工作模型
需要指出的是,由于无法对数量稀少的人类胚胎进行遗传操作,上述结果之间只存在相关性而非因果性。同时,数量有限的实验样本也令其中大部分结论效力偏弱,无法在更大的范围上推广验证。
即便如此,这一系列发现也能为辅助生殖的临床研究提供很多重要信息。如Zernicka-Goetz教授本人所言:“如果我们知道哪个细胞更容易发育为胎儿,我们也就更容易找到那些能够成功降生的胚胎。”
参考文献:
Coorens, T. H. H., Oliver, T. R. W., Sanghvi,R., Sovio, U., Cook, E., Vento-Tormo, R., Haniffa, M., Young, M. D., Rahbari,R., Sebire, N., Campbell, P. J., Charnock-Jones, D. S., Smith, G. C. S., &Behjati, S. (2021). Inherent mosaicism and extensive mutation of humanplacentas.Nature, 592(7852), 80–85. https://doi.org/10.1038/s41586-021-03345-1
Fasching, L., Jang, Y., Tomasi, S., Schreiner,J., Tomasini, L., Brady, M. V., Bae, T., Sarangi, V., Vasmatzis, N., Wang, Y.,Szekely, A., Fernandez, T. V., Leckman, J. F., Abyzov, A., & Vaccarino, F.M. (2021). Early developmental asymmetries in cell lineage trees in livingindividuals.Science. https://doi.org/10.1126/science.abe0981
Junyent, S., Meglicki, M., Vetter, R.,Mandelbaum, R., King, C., Patel, E. M., Iwamoto-Stohl, L., Reynell, C., Chen,D.-Y., Rubino, P., Arrach, N., Paulson, R. J., Iber, D., & Zernicka-Goetz,M. (2024). The first two blastomeres contribute unequally to the humanembryo.Cell, 0(0). https://doi.org/10.1016/j.cell.2024.04.029
Morris, S. A., Teo, R. T. Y., Li, H., Robson,P., Glover, D. M., & Zernicka-Goetz, M. (2010). Origin and formation of thefirst two distinct cell types of the inner cell mass in the mouse embryo.Proceedingsof the National Academy of Sciences, 107(14), 6364–6369. https://doi.org/10.1073/pnas.0915063107
Piotrowska, K., Wianny, F., Pedersen, R. A.,& Zernicka-Goetz, M. (2001). Blastomeres arising from the first cleavagedivision have distinguishable fates in normal mouse development.Development, 128(19),3739–3748. https://doi.org/10.1242/dev.128.19.3739
Płusa, B., & Piliszek, A. (2020). Commonprinciples of early mammalian embryo self-organisation.Development, 147(14),dev183079. https://doi.org/10.1242/dev.183079
Reardon, S. (2024). Human embryos embraceasymmetry to form the body.Nature, d41586-024-01403-y. https://doi.org/10.1038/d41586-024-01403-y
Spencer Chapman, M., Ranzoni, A. M., Myers,B., Williams, N., Coorens, T. H. H., Mitchell, E., Butler, T., Dawson, K. J.,Hooks, Y., Moore, L., Nangalia, J., Robinson, P. S., Yoshida, K., Hook, E.,Campbell, P. J., & Cvejic, A. (2021). Lineage tracing of human developmentthrough somatic mutations.Nature, 595(7865),85–90. https://doi.org/10.1038/s41586-021-03548-6
原文链接:
https://www.cell.com/cell/fulltext/S0092-8674(24)00455-0
文章来源:“遗传与发育”,如有侵权,联系删除。


